


服务热线
15623758226

哮喘是一种由慢性气道炎症引起的自身免疫相关性疾病,其特征包括气道高反应性和可逆性气流受限。该病涉及多种细胞(如嗜酸性粒细胞、中性粒细胞和气道上皮细胞)及其分泌的炎性介质共同作用。全球约有3.39亿人罹患哮喘,每年近250万人因病情急性加重而死亡,且患病率持续上升。其中,约10%的患者属于严重哮喘,治疗难度大、控制不佳,对生活质量造成显著影响。
哮喘的症状表现
哮喘的典型症状包括反复发作的喘息、气促、胸闷和咳嗽,尤其在夜间或清晨加重。咳嗽可能为干咳或伴少量白色黏痰,部分患者以咳嗽为唯一表现(咳嗽变异性哮喘)。症状常因接触过敏原、冷空气、运动、呼吸道感染或情绪波动而诱发。严重发作时可出现呼吸困难、说话困难、辅助呼吸肌参与呼吸,甚至发绀。症状具有可逆性,经支气管扩张剂治疗后多可缓解,但若控制不佳,可能导致肺功能持续下降。
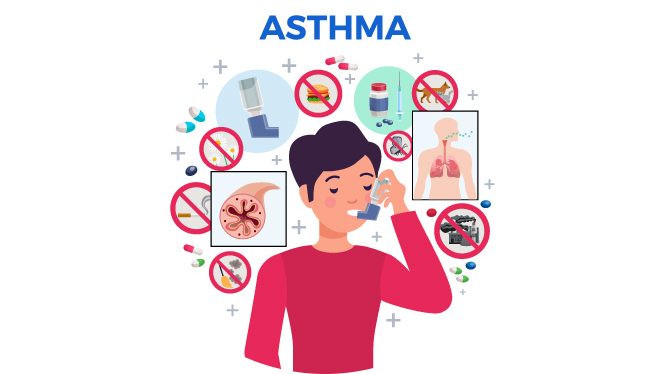
哮喘的过敏原
哮喘的常见过敏原主要包括吸入性物质,如尘螨、花粉、霉菌孢子、宠物皮屑及蟑螂排泄物等,这些是诱发过敏性哮喘的主要因素。此外,某些职业环境中的物质(如面粉、化学品、乳胶)也可能引发职业性哮喘。虽然冷空气、烟雾、空气污染、呼吸道病毒感染及强烈气味等并非典型过敏原,但同样可刺激气道,诱发或加重哮喘症状。明确个体过敏原并通过皮肤点刺试验或血清IgE检测进行识别,有助于有效规避诱因,改善病情控制。
致病机理
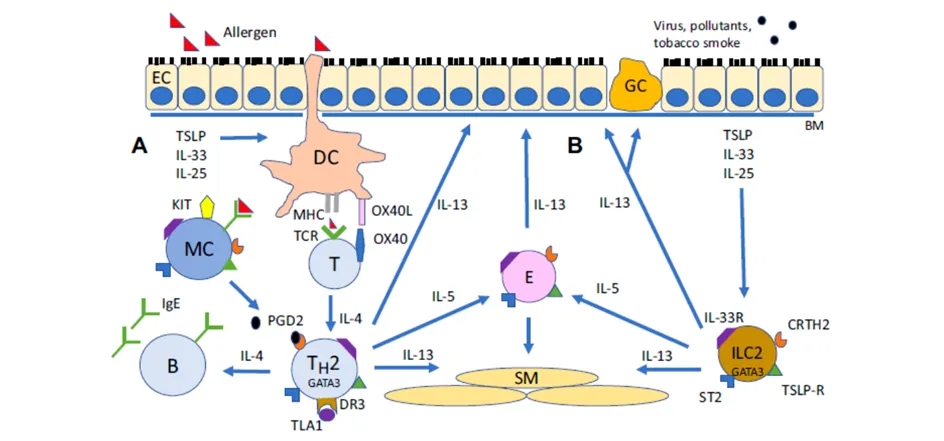
2型炎症型哮喘(T2型)主要由Th2细胞和2型固有淋巴细胞(ILC2)驱动,其核心机制是IL-4、IL-5、IL-13及IgE等介质的过度产生。过敏原或污染物刺激肺上皮细胞释放TSLP、IL-33和IL-25,激活树突状细胞表达OX40L,进而诱导初始CD4⁺ T细胞分化为Th2细胞。IL-5促进嗜酸性粒细胞的成熟与浸润;IL-4和IL-13则上调黏附分子和趋化因子eotaxin,招募嗜酸性粒细胞至气道,同时诱导杯状细胞增生、黏液分泌增多、气道平滑肌对β受体激动剂反应降低,并促进IgE合成。IgE结合肥大细胞后,在再次接触过敏原时触发炎症介质释放,引起支气管收缩与高反应性。此外,ILC2可在无Th2和IgE参与下,直接响应上皮细胞因子释放IL-5/IL-13,构成非经典T2通路。
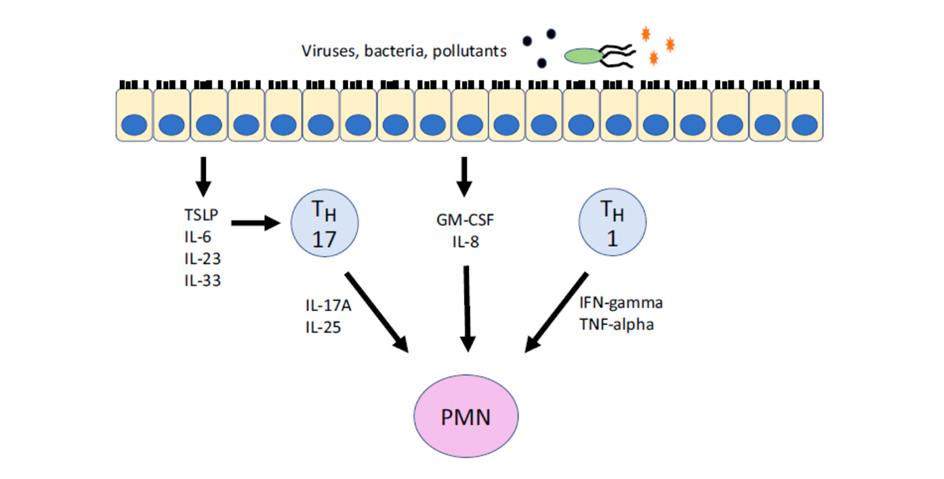
非2型(non-T2)哮喘多见于中老年人,通常缺乏典型特应性表现(如食物过敏、特应性皮炎、过敏性鼻炎或鼻息肉),血清特异性IgE水平低或阴性,且对吸入性糖皮质激素治疗反应差。其主要炎症特征为气道中性粒细胞浸润,可能与持续性细菌或病毒感染、胃食管反流、空气污染或吸烟等因素相关。这些刺激可激活气道上皮细胞和巨噬细胞,释放IL-8、IL-17、TNF-α等促炎因子,招募中性粒细胞并维持慢性炎症状态,导致气道重塑和不可逆气流受限。此外,氧化应激和神经源性炎症也可能参与其发病机制。
最新药物研发方向
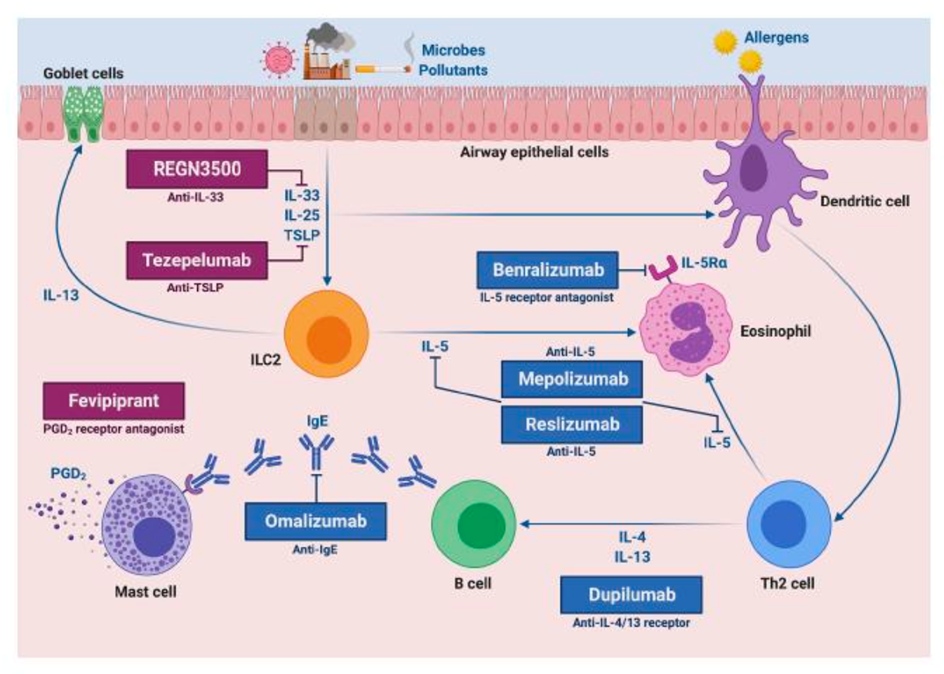
针对2型哮喘的免疫通路,现有生物制剂主要靶向IgE、IL-4、IL-5、IL-13及上游因子TSLP,通过中和关键炎症介质或阻断其受体,有效抑制气道2型炎症。这些药物经结构优化后半衰期延长,给药周期通常为2–8周,可使哮喘急性发作率降低40%–60%。其中,抗IgE单抗奥马珠单抗(omalizumab, OMA)作为哮喘领域首个靶向生物药,已在全球应用十余年,适用于控制不佳的中重度过敏性哮喘,目前仍是国内外临床唯一获批的抗IgE治疗药物。
已上市的哮喘生物制剂
目前,重度哮喘的生物制剂治疗主要聚焦于2型(T2)炎症通路。奥马珠单抗(Xolair)作为首个抗IgE药物,通过中和游离IgE阻断过敏级联反应,适用于中重度过敏性哮喘,近年国内已上市两款生物类似药。
靶向IL-5/IL-5R的美泊利珠单抗、瑞利珠单抗和苯瑞利珠单抗(Fasenra)可显著降低嗜酸性粒细胞水平,用于嗜酸粒细胞性哮喘。度普利尤单抗(Dupixent)通过抑制IL-4Rα,同时阻断IL-4与IL-13信号,广泛调控T2炎症。
最新药物替西利珠单抗(Tezspire)靶向上游警报素TSLP,兼具抑制T2及非T2炎症的潜力,适用人群更广。近期,Fasenra在三项III期试验中将急性加重风险降低28%–51%,并使激素依赖患者口服激素用量中位减少75%;Dupixent在T2高表型患者中年发作率下降53%–69%,肺功能和症状控制显著改善。
两款药物为难治性哮喘提供高效、激素减量的新方案,推动临床治疗与市场格局持续升级。
菲恩生物聚焦哮喘等2型炎症相关疾病研究,提供高纯度、高活性的关键细胞因子蛋白(如IL-4、IL-5、IL-13、TSLP)、特异性抗体及ELISA检测试剂盒,全面支持哮喘发病机制解析、生物标志物验证及靶向新药研发。
以下是菲恩生物 哮喘 相关指标产品推荐:
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
